细胞增殖通常促进细胞分化,而增殖静息是维持干细胞身份的经典策略——在哺乳动物中,缓慢周期的造血、神经和肠道干细胞依靠静息实现长期自我更新,快速增殖的干细胞则容易耗竭或过早分化。在植物中,根尖静止中心和茎尖分生组织中央区也长期被视为“慢分裂维持干细胞”的范例。然而,植物茎分枝起始细胞是否同样依赖静息来维持命运,一直缺乏直接的实验证据。
2026年10月30日,北京大学、北大-清华生命科学联合中心焦雨铃研究组和首都师范大学汪颖研究组联合国内外多家单位,以“Cell cycle-driven epigenetic resetting maintains meristematic cell fate for shoot branching”为题在 Nature Plants 发表研究论文。该研究以拟南芥叶腋处的芽前体细胞为模型,揭示了一个与哺乳动物相反的命运维持范式:植物颠倒了“增殖促进分化、静息维持干性”的经典逻辑——芽前体细胞的分生组织命运维持恰恰依赖于活跃的细胞周期进程,而细胞增殖通过周期性的表观遗传重置对抗多梳复合体(Polycomb)介导的基因沉默,保障分支潜能。
腋芽起源于叶腋边界区域持续表达分生组织标志基因SHOOT MERISTEMLESS(STM)的芽前体细胞。过去认为这类细胞与静止中心类似,长期处于静息状态。利用EdU掺入标记与活体延时成像,研究团队发现芽前体细胞实际上维持着缓慢但持续的分裂,并在腋芽起始前加速分裂。通过边界特异性启动子在叶腋表达细胞周期抑制因子KRP4阻断细胞分裂后,STM表达显著下降并最终消失,细胞核由圆形转变为梭形分化形态,腋芽无法形成;而表达G1/S促进因子CYCD3;1加速分裂,则能增强STM表达、提前启动腋芽并产生额外腋芽。这些结果表明,细胞增殖是分生组织命运维持的必要条件。
机制层面,研究团队发现KRP4介导的STM沉默伴随着STM基因座H3K27me3水平显著升高,而PRC2催化亚基CLF缺失突变体能够挽救KRP4引起的腋芽缺陷,证明PRC2依赖的H3K27me3沉积是沉默STM的关键环节。为解析PRC2的招募机制,他们鉴定出STM基因座中的多个Polycomb响应元件(PRE),包括GA重复序列与telobox序列;通过酵母单杂交、染色质免疫沉淀及酵母双杂交/免疫共沉淀实验,证实边界表达的锌指蛋白RBE与BPC1/BPC6结合这些PRE元件,将PRC2复合体招募至STM位点。与之相对,细胞分裂则通过复制偶联的方式稀释H3K27me3。在同步化细胞系及原生质体培养体系中,PRE的存在足以驱动H3K27me3沉积并抑制报告基因表达,而分裂停滞会使该抑制标记迅速积累,基因表达随之关闭。
在此基础上,研究团队构建了整合组蛋白修饰动态、STM表达与细胞分裂的混合数学模型。分析表明该命运决定系统是一个双稳态开关:低H3K27me3、高STM的多能态与高H3K27me3、STM沉默的分化态共存且难以互转;长时间的分裂停滞将大幅提高不可逆分化的概率,快速细胞分裂维持并促进干细胞活性。
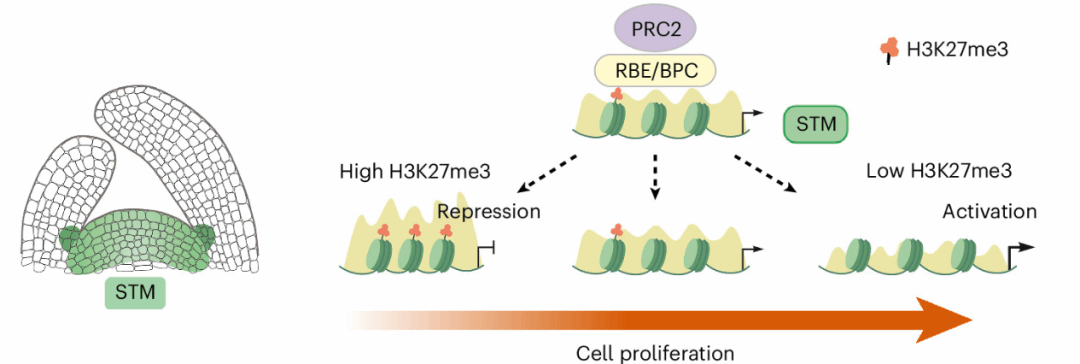
该研究打破了干细胞干性维持依赖细胞静息的传统认知,揭示植物腋芽前体细胞依靠周期性细胞分裂稀释多梳抑制标记、实现表观遗传重置,以此稳定分生组织身份;这一由细胞周期驱动的双稳态调控范式,为理解植物干细胞命运调控提供了全新框架。
本研究第一作者为博士后郭亚鹤;杨溢完成数学建模;彭子原、石碧海、王泓力、曹秀卫等参与实验;何跃辉教授、肖军研究员、陶乐天教授、Masaaki Umeda教授、Robert Sablowski教授提供重要支持;北大-清华生命科学联合中心焦雨铃教授、首都师范大学汪颖教授为共同通讯作者。研究得到国家自然科学基金、英国皇家学会牛顿高级学者基金、日本JSPS科研经费资助。生命科学学院仪器中心为本研究提供了重要平台支持。
原文链接:https://www.nature.com/articles/s41477-026-02445-y


